アブストラクト
今回は非常に大きな問いかけを致します。「オートポイエーシスが要求する自己維持の条件を考えると、生物の多様性が自然発生するように見える」、というのが、Monogokoroの主張です。生物多様性を述べる定番は進化論ですが、「進化論の手前の段階で多様性は生まれている」、と主張致します。
Monogokoroでは暫くトーマスのストレンジアトラクターについて考察してきました(「ストレンジアトラクターのコントロール1~7」, 「生物の「状態伝搬」の模倣)。この過程で、似た現象が別の方法でも作れ、且つそれが異なる状況の場面では、異なる状態になることがあることに気づきました。これは私が働き初めの頃、トランジスタモデルを作製する時に感じたことを思い出させ、そしてオートポイエーシスと結びついたのでした。こうした思考過程を述べながら、主張点を説明致します。
ストレンジアトラクターによる選択の違い
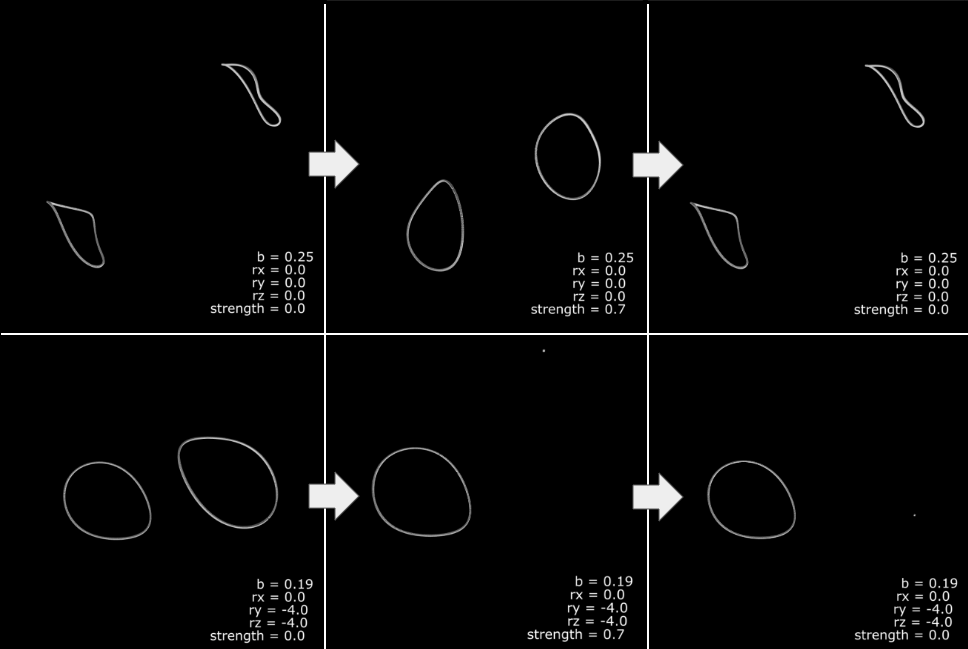
トーマスのストレンジアトラクターでフィードバック内にtransform POPによる回転や、twist POPによる回転を加えるオペレータを加えた状態で、ストレンジアトラクターの結合度合いを決めるバラメータbや、場の状態を決めるRotateやねじれ度合いを決めるStrengthの値を変えて、状態変化を観察していました。その際次のことを観測しました。映像をまとめたので、先にそれ見ていただきましょう。右下にパラメータが表示されます。まず最初の映像は、bの値を変えることからはじめた場合です。
次にRotateパラメータを変えることからはじめた場合です。
この2つの映像を注意深くみてみましょう。最初、パラメターたbを0.19から0.25に変えた場合と(最初の映像)、パラメターbを0.19のままにしてRotateをrx=0, ry=rz=-4とした場合(2番目の映像)、どちらもアトラクタは2つの離れた軌道に収束します(単振動が2つできた状態)。ですので、パラメータばbを変えた場合と、ry=rz=ー4とした場合は似た状態といえます。その後パラメターbを0.25にした方のtwistのStrengthを0.7に変えると、軌道は変わりますが、2つの単振動をほぼ均等な2つの単振動状態を維持しました。単振動を2つ持つと言う意味では状態は変わっていません。その後Strength=0にもどすと、元に戻りました。
一方、rz=0, ry=rz=-4として、最初2つの単振動を作製した場合、次のtwistのStrengthを0.7に変えた場合、一方は単振動に、他方は一点に縮退しました。これは一つの単振動と一点への収束という状態なので、前の状態と違う状態になったと言えます。その後twistのStrengthを0に戻すと、2つは単振動の動きではありますが、一方の粒子は一点に縮退したままでゆっくりと動きます。これは前のrz=0, ry=rz=-4, Strength=0が2つの単振動であったのに対して、一方が縮退している点で違った状態になっています。前の操作が影響したのです(前の状態に影響する理由として、軌道を描くフィードバック内にtransform POPとtwist POPが並んで入っていることが関係していると思います)。つまり、最初の2つの単振動の状態を作る方法には、少なくともバラメータbを変える方法と、Rotateを変える方法がありました。この違いが続くStrengthのパラメターを変えた場合の振舞の違いになり、それはパラメターを戻しても違いが残りました。
オートポイエーシス的解釈
この現象に出会って思ったことは、生物に対する状態の変化です。オートポイエーシスでは、生物は外部環境に対して、フィードバックプロセスを使って自己維持するシステムです。生物は非常に沢山の相互作用でできています。このため無数のパラメータがあると言っていいでしょう。そこで思ったのが、生物は外部環境が変わった時、パラメータαを変えて自己維持する場合もあるし、パラメータβを変えて自己維持する場合もあるということです。同じ生物でも個体の学習により、ある状態変化に対してαを選択する個体もあるし、βを選択する個体もあるのです。前回のblogで、「オートポイエーシスを提唱した、マトゥラーナとバァレラはカエルやハトの脳神経活動についての実験研究を行っています。ここで生命体の神経システムが機械とはまったく異なることに気づきました。生物の神経システムでは、外部刺激と内部刺激のあいだに直接の因果関係はありません。通常外部の環境に合わせて内部状態を変化させていると考えますが、生物はそうなっていません。最も重要なのは外部環境が変わっても自身を維持することです。ある外部の信号に対して特定の反応で対応するのではないのです。」と述べましたが、この原因が上に述べた、同じ状態を作るのに、様々な場合が取れるということです。そしてこのことを外部の変化に対して特定の部分を測定しても、対応した決まった信号を出力するのではない理由です。この現状は、外部環境は擾乱としてあり、内部の変化とは外部と関係なく決まるように見えるため、オートポイエーシスが閉じたシステムと言われる所以です。実はそれぞれの体験によって、何を変えて自己維持しているのかが違っているのです。
つまり自己維持の方法は一つではありません。これが前節のアトラクターの場合では、bを変えた場合とRotatoを変えた場合です。そして続いて別のパラメータを変える状態が生じた時、前の選択が影響して、それぞれが違う状態になることがわかりました。前節はこれを現わしています。ある特定の外部状態に対応するため、bを変える、あるいはRotateを変える選択が、次のtwistのStrengthを変える場面になると、違う状態を創り出すことになりました。つまり同じStrengthのパラメータ値を使っても、両者は別の状態になったのです。これが更にStrengthの値を元にもどした場合にも影響しました。このように、生物はパラメータが多いが故に、自己を維持するパラメータは複数あり、状況応じて或いは自身の置かれたこれまでの違いによる学習に応じて、自己維持のためのパラメータやその値は、違ったものになるだろう、という推測が成り立ちます。その選択の違いが、次の展開に対して、例え同じパラメータ値を使っても、別の状態になる場合もあるということです。これが生物の多様性に繋がるのではないか、と考えました。
トランジスタのモデル化の例
前節の解釈を考えている時、若い頃トランジスタのモデル化を行っていた時のことを思い出しました。これはトランジスタの等価回路を作る場合です。一旦等価回路ができると、トランジスタの部分に等価回路を使い、全体の回路シミュレーションを行っていきます。まずトランジスタの特定のバイアス時で、特定の周波数範囲でSパラメータを測定します。DC値も測ります。これらの特性が一致する等価回路を決めるようにパラメータフィッティングしていきます。この時、LとCの関係や抵抗の場所の関係では、パラメータが一意に決まらない時があります。また大信号のパラメータはこれらの測定だけではそもそも決まりません。それをそのまま、バイアスが違う場合の特性や、入力が大信号になった場合のシミュレーションに使うと、これらは違ったシミュレーション結果になります。バイアスを変えても、大信号を入力しても、実際のトランジスタの特性を反映できるように、パラメータを測定結果と一致するように追い込んで行きます。これを思い出すと、最初の一点のバイアスだけのSパラメータでは、同じようになる組み合わせは複数あります。それぞれに対して同じ大信号を入れた場合、その振る舞いは別々のモノになります。つまりそれはある条件では同じ振舞いをしたが、実際には別のトランジススタモデルになっているのです。
パラメータフィッティングの例は、前節及び前々節で述べた内容と似ています。生物はパラメータが沢山あるので、ある状態で学習してパラメータを決めても、そのパラメータの組み合わせはそれだけではありません。沢山の解があるわけです。それぞれのパラメータを持った生物が別の環境にに出会った時、ある状況では同じ振舞いになる生物が、別の状況では異なる振舞になることは多々あるだろうと推察できます。このようなことが実際にも起こっているのではないか、というのがMonogokoroの意見です。
生物多様性
生物でも似たようなことが起こっているとすると、普段は全く同じように見える二人が、大きな環境変化にさらされると、一人は適応でき、一人は適応できない、ということが生じます。この見方は2つあります、一つはパラメータが完全に独立しているのではなく、前の状態に対してパラメータの反応が影響を受ける場合、そしてもう一つが「内部パラメータ値が異なっていた」と見ることになります。どちらも在る場合が自然でしょう。「内部パラメータ値が異なっていた」とする場合は、普段の測定範囲では区別できなかっただけです。相空間でいうと、x,yだけ測定しているとA系もB系も同じようにみえますが、しかし実は高次元で、x,y,z, w, p, q、・・・・では全然違う場所にいるかもしれません。だから大きく揺さぶられると、異なる方向へ動きます。相互作用がある場合は、在るパラメータが別のパラメータの関数になっているモデルになります。そしてこれらが多様性に繋がるという点が今回の主張です。もし生物があらゆる状態を体験して最適解を探しているなら、唯一の最適解があるだけです。しかし実際には世界のほんの一部しか知り得ません。この状態でパラメータを決めていきます。このようになる根源的な原因は、生物は「正解を求めているわけでなく、自己維持できれはよいとするシステム」だからでしょう。制約は自己維持ということです。この条件でパラメータを決めるので、幅があると推察します。そうなると、個体差とは、「同じ機能を実現している多用な内部モデルの違い」と言えます。そして生物の学習は、おそらく、パラメータを一意に同定することではなく、自己維持という条件を満たす別解を探索し続けるプロセスです。Aを経験した個体、Bを経験した個体、AからCの変化を経験した個体、BからDへそしてEへの変化を経験した個体で、課される制約はそもそも変わります。だから制約の集合そのものが、個体毎に違うことになります。共通した暮らしの部分も多いですから、その部分は似た振る舞いになるでしょう。これらをまとめると、個体差とは「過去に受けた制約履歴の違いによって形成された内部パラメータ集合の違い」ということになります。そうなると、多様化は進化の副産物ではありません。自己維持の原理(オートポイエーシス)から自然に生じる性質となります。
まとめ
ストレンジアトラクターの振舞いから、調子に乗ってどんどん考察していると、最後は、個体差とは、「過去に受けた制約履歴の違いによって形成された内部パラメータ集合の違い」、多様化は進化の副産物ではなく、自己維持の原理(オートポイエーシス)から自然に生じる性質」と、非常に大胆な結論になりました。工学の多くの場合は、一つの答えを求めようとしますが、生物はそのつもりはないようです。自己維持さえできればよい、その結果多様性を生み出します。自己維持の原理(オートポイエーシス)そのものが多様性を生み、進化はその多様性を利用していると見れます。これは環境に適応するように進化することで多様性ができるという従来の考えと違っています。進化する前提に多様性があることになります。
TouchDesigner等のプログラムが、こうした根本的な問題を問うのに繋がったことは、新たな可能性を感じました。プログラムを仕事としていると、プログラムができれば終わりですが、何かを見つけようとする姿勢が、こうした考察を生じさせます。
コメント